
Граница между пермским и триасовым периодом 250-260 млн. лет назад – одна из самых волнующих тем в палеонтологии. Этот рубеж, разделивший две эры и эпохи, когда биота Земли кардинально поменяла свой видовой состав, как на земле, так и на море давно привлекает внимание ученых. Шутка ли, рубеж между пермью и триасом обозначился одним из самых массовых вымираний в истории планеты, когда вымерло более 90% населявших ее живых существ. По сути, перед нами после этого рубежа предстали две совершенно разные планеты. Пермский период – это вам не конец мезозоя, когда мир уже стал во многом таким же, как сегодня – это практически другая планета. Незнакомые очертания материков, странноватые твари среди необычной растительности, и даже состав атмосферы, солнечный спектр и земная гравитация немного не такие, как на знакомой нам Земле кайнозоя и мезозоя. И никаких вам динозавров: их общий предок тогда выглядел как-то так (зеленый) – питался преимущественно насекомыми, назывался проторозавр.
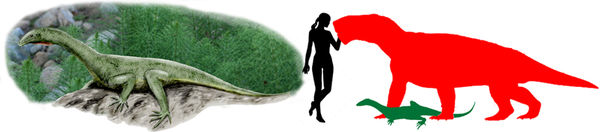
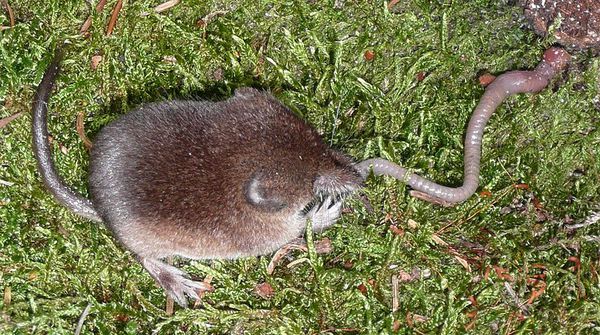
И вряд ли бы такие вот зверьки, как на первой и правой картинках, за просто так выпустили бы его потомков в более крупный размерный класс. Что же случилось? Случилось страшное. Примерно 251,4 млн. лет назад произошла самая крупная биосферная катастрофа в истории Земли – за короткий по геологическим меркам срок перемерло более 95% видов всех живых существ (для сравнения, мел-палеогеновое вымирание – оно же «вымирание динозавров» – унесло лишь одну шестую часть видового разнообразия планеты). В результате с лица Земли исчезли целые отряды и даже классы; большая часть парарептилий, многие виды рыб и членистоногих (в том числе знаменитые трилобиты), не говоря уж о звероящерах. Катаклизм сильно ударил даже по миру микроорганизмов. В породах, датируемых несколькими миллионами лет после вымирания, встречаются по большей части останки лишь примитивных форм жизни. Минимум через 5-10 миллионов лет после катастрофы видовое разнообразие начало потихоньку восстанавливаться.
Трапповая катастрофа
Анализы пород показывают, что за короткий по геологическим меркам промежуток времени температура на всей Земле тогда выросла на 10-15 градусов по Цельсию, а концентрация кислорода упала почти в три раза. Колоссальная по своим масштабам засуха превратила плодородные места многих континентов в выжженные пустыни. Пересохли реки и озёра, в некоторых районах дожди, возможно, прекратились совсем. В океанах ситуация была ещё хуже – из-за недостатка кислорода в глубинах вод размножились анаэробы, выделяющие сероводород. Большая часть Мирового океана оказалась отравленной.
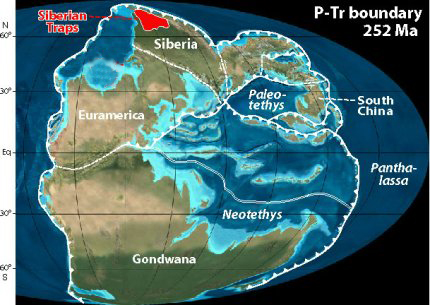
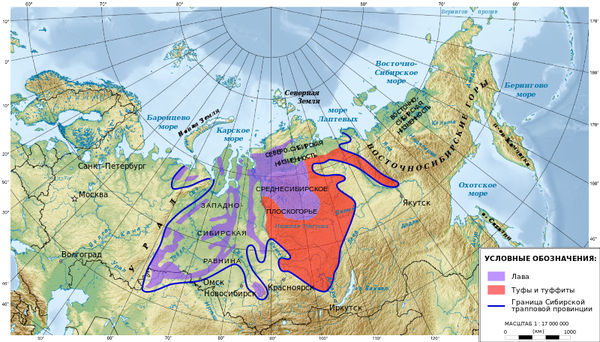
Никакого астероида на рубеже перми и триаса на Землю, конечно, не падало (по крайней мере, кратера никто так и не смог найти), зато произошла самая крупная за всю историю Земли серия вулканических извержений, да не простых, а трапповых. Чтобы представить себе масштаб явления, достаточно ясной лунной ночью задрать голову вверх: темные пятна на Луне, образующие «лицо» – лунные моря – это следы гигантских лунных трапповых излияний произошедших миллиарды лет назад. На Земле же следы самого крупного, пермско-триасового извержения хранит Сибирь (в том числе и Томская область). Территория около 2 млн. км² от Урала до Лены покрыта базальтами – застывшей лавой.
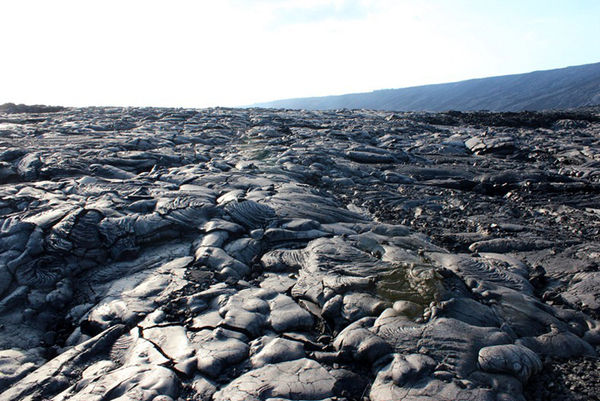
Никто до сих пор толком не знает, как происходят подобные извержения. Предположительно, они напоминают трещинные вулканы на Гавайях, но в сотни, тысячи раз масштабнее – земная кора на большой площади буквально расплавляется идущим из недр потоком сверхгорячей магмы, и из трещин начинает поступать жидкая лава, выжигая все вокруг на десятки, сотни и тысячи километров. Потом лава застывает, рядом образуются новые трещины… Продолжался этот трапповый ад в Сибири (точнее, на севере Пангеи) с небольшими перерывами несколько сотен тысяч лет(!), заливая лавой всё большие территории. Объем извергнутых расплавов составил, по разным оценкам, 1-4 млн км³.

Смена биосферы
Помимо лавы вулканы выбрасывают в воздух тонны пепла, сернистого газа, хлородорода и другой дряни. Газы влекут за собой кислотные дожди, а мелкие частицы пепла в атмосфере рассеивают солнечные лучи, не давая планете прогреться. Так что уже в первые годы излияния должны были вызвать глобальное похолодание и другие нехорошие последствия. Но извержения не прекращались, и в воздух за сотни и тысячи лет было выброшено огромное количество парниковых газов, главным образом углекислого, так что спустя некоторое время глобальное похолодание сменилось глобальным потеплением. Температура непрерывно росла, а содержание кислорода – падало. Вдобавок лава накрыла северопангейские угольные пласты. Микрочастицы алюмосиликатов – ценосферы, что образуются при сжигании угля – поднимались на большую высоту и оседали по всей планете. Главный удар пришелся по жителям океанов: вместе с большим количеством пепла в океанах повысилось содержание ядовитых элементов, главным образом мышьяка и хрома. В слоях пород удалось выделить три чётких слоя ценосфер, притом последний как раз предшествует вымиранию.

Катастрофа усилилась, когда на дне прогревшегося океана начали разлагаться залежи метангидратов. Выделяющийся метан вызвал стремительное повышение глобальной температуры ещё на 5 градусов. Содержание кислорода также резко упало: он тратился на окисление метана. Этот удар ослабшая биосфера уже не смогла вынести.
На восстановление биосферы по разным оценкам ушло от 10 до 30 млн. лет, и это была уже другая совсем другая биосфера. Из синапсид выжили преимущественно мелкие и наиболее продвинутые цинодонты – в следующем, триасовом, периоде давшие первых млекопитающих. Остальных, покрупнее, потихоньку выдавили потомки проторозавра и его родственников– тогда еще холоднокровные и по сравнению с синапсидами более голодо-, жаро- и засухоустойчивые архозавры, от которых произошли динозавры, занявшие место мегафауны.
Такое положение сохранялось почти 186 миллионов лет, пока планетарное экологическое равновесие не было нарушено очередным – но не таким крупным – трапповым извержением магмы, на этот раз на плато Декан в Индии, поспособствовав вымиранию очередной партии мегафауны, которой к тому моменту были динозавры. Правда, стоит отметить и упавший примерно в то же самое время 10-километровый Чиксулубский метеорит, который довершил дело.
Платеозавры даже с виду напоминают переходное звено между проторозавром и гигантскими юрскими зауроподами , каковым, собственно, и являются:

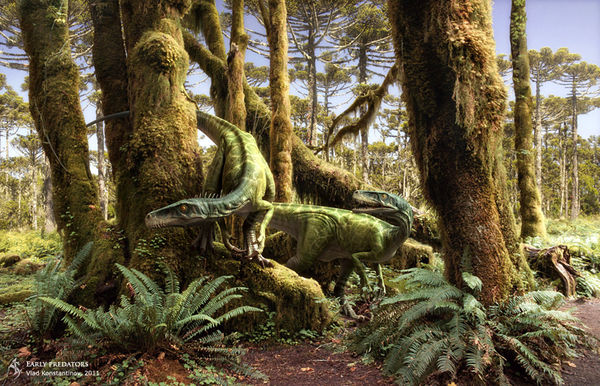
Герреразавры – одни из первых хищных динозавров . Впрочем, некоторые ученые считают, что они недостойны называться динозаврами:
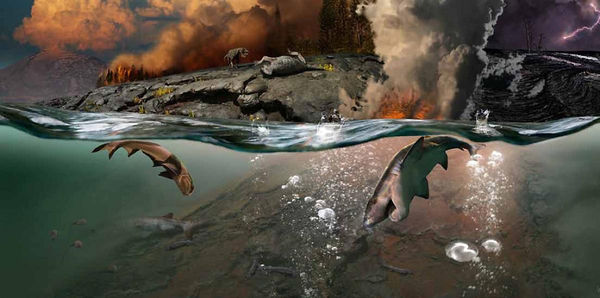
Типичная картина прибрежного залива перми во время излияния траппов:
Фауна перми
290 млн. лет назад, начало пермского периода. Животное, что выскакивает из воды – эриопс, продвинутое двухметровое земноводное, реликт предыдущей эпохи – каменноугольного периода. Первые тероподы возникли еще раньше, в девоне, 360 млн. лет назад. И вот получается, без малого 70 миллионов лет – больше, чем прошло времени от вымирания динозавров до наших дней – эти самые тетраподы так и продолжали сидеть в болоте. Особо вылезать им было некуда и незачем – поверхность суши, свободная от ледников (а каменноугольный период был эпохой довольно прохладной), представляла собой либо заваленные гниющими стволами деревьев болота, либо материковую пустыню.
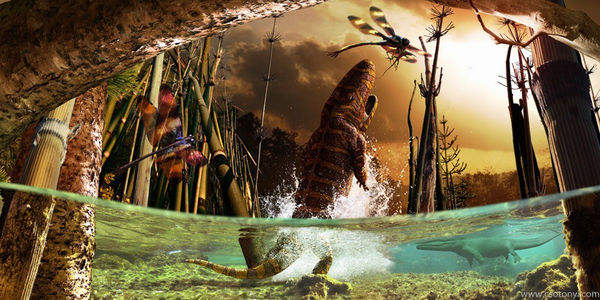
В болотах-то твари и копошились. На самом деле они времени зря не теряли и мало изменились только внешне – анатомически самые продвинутые из них успели пройти путь от почти рыбы через "классическое" земноводное до почти рептилии – вот как этот эриопс, относящийся к классу темноспондилов.
Самые примитивные из темноспондилов к началу пермского периода еще сохраняли рыбьи черты – боковую линию, чешую (причем местами, например на брюхе), но это были не ажурные создания типа современных тритонов и лягушек – нет, мощные, как крокодилы, с черепами, напоминавшими башни танков: сплошными, обтекаемой формы, лишь с амбразурами для ноздрей и глаз – такими были эти земноводные. Раньше их называли «стегоцефалы» – панцирноголовые.

Самый большой – склероцефал, судя по округлой пасти – молодой (у старых особей, выраставших до двух метров в длину, морда вытягивалась и напоминала морду аллигатора, а хвост, наоборот, укорачивался – возможно, с возрастом склероцефалы становились более "наземными" и напоминали по образу жизни крокодилов, так их останки и распределены – молодых в отложениях глубоких озер, скелеты старых на бывших мелководьях и в болотах). Склероцефал преследует рыбу-акантоду, а на заднем плане виден ортакант – пресноводная акула, тоже молодая (взрослая достигала бы длины трех метров и сама бы гоняла склероцефала). Справа, лежит на дне у берега – еще более, чем эриопс, продвинутое создание – сеймурия: уже не земноводное, еще не ящер. Она уже имела сухую кожу и могла подолгу находиться вне воды, но всё еще метала икру, а ее личинки имели наружные жабры. Откладывай она яйца - ее можно было бы уже назвать рептилией. Но сеймурия застряла в прошлом - яйца были изобретены какими-то ее сородичами еще в конце карбона, и эти-то сородичи и положили начало предкам млекопитающих и пресмыкающихся.
Все эти твари на картинках не являются предками друг другу – это всё боковые ветви той эволюционной цепочки, что привела в конечном итоге к появлению млекопитающих, и лишь иллюстрируют ее этапы. Эволюцию обычно творят мелкие неспециализированные зверьки и ящерки, но зверьков и первых ящеров показывать неинтересно – в то время все они походили на ящериц… Другое дело их могучие родичи, хоть и тупиковые ветви:
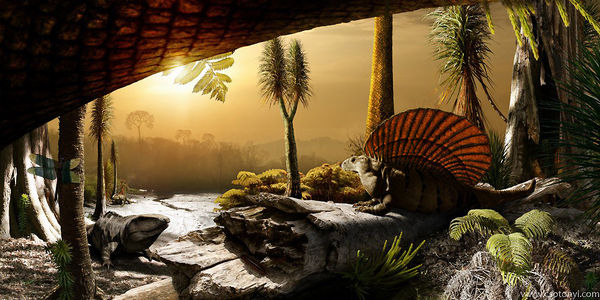
Слева – офиакодон, справа – эдафозавр. Один с парусом, другой без, но оба этих существа относятся к одному отряду пеликозавров и эволюционно стоят ближе отнюдь не к динозаврам, а к млекопитающим – точнее, эта группа застряла где-то на трети пути от земноводных к млекопитающим и оставалась таковой, пока их не вытеснили более прогрессивные сородичи. Парус на спине – одна из первых попыток синапсид не ждать милостей от природы, а научиться самостоятельно регулировать температуру тела; наши предки и их родичи в отличие от прочих ящериц, едва выйдя на сушу, почему-то сразу начали интересоваться этой темой.

Теоретические расчеты (подопытных пеликозавров у нас все равно нет) показывают, что 200-килограммовый хладнокровный диметродон (а на рисунке – он: тоже пеликозавр, но хищный и из другого семейства) разогревался бы без паруса с 26°C до 32°C за 205 минут, а с парусом — за 80 минут. Причем благодаря вертикальному положению паруса мог использовать самые ранние утренние часы, пока беспарусные еще не очухались, и по-быстрому перейти к бесчинствам:
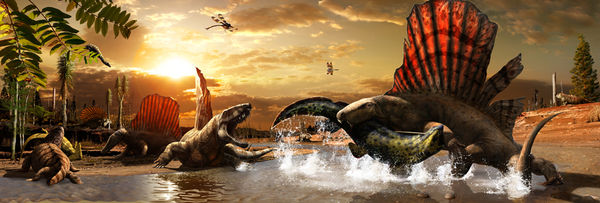
Тут видно что на завтрак диметродон поймал ксенакантуса – еще одну пресноводную акулу. Точнее, те, что поближе – диметродоны, а подальше понурился их меньший брат секодонтозавр – более хилый и с мордой, напоминающей крокодилью. Слева эриопс под шумок тащит в пасти диплокаулуса – странную амфибию с головой как у акулы-молота; иногда пишут, что такая голова это защита от проглатывания более крупными хищниками, другая теория предполагает использование ее как своеобразного крыла для плавания… За ними – эдафозавр, а сверху, на ветке, можно, приглядевшись, увидеть ареосцелиса – тварь, напоминающую ящерицу – одного из первых диапсид. Вот так тогда было – родственники предков млекопитающих рвали мясо, а крохотные насекомоядные родственники предков динозавров с немым ужасом взирали на них с веток.
Парус в итоге оказался неудачной конструкцией (сами представьте такой радиатор таскать – он не складной был!). Во всяком случае, парусные пеликозавры в основном повымерли уже к середине перми, вытесненные потомками своих беспарусных родичей… но факт остается фактом – звероящеры-терапсиды, потомками которых являемся и мы с вами, произошли от сфенакодонтов – группы пеликозавров, к которым принадлежал и уродский диметродон (только не от диметродона, конечно, а от каких-то его мелких сородичей). Парусу нашлась какая-то удачная альтернатива – возможно даже, примитивную метаболическую теплокровность имели уже вот такие создания:
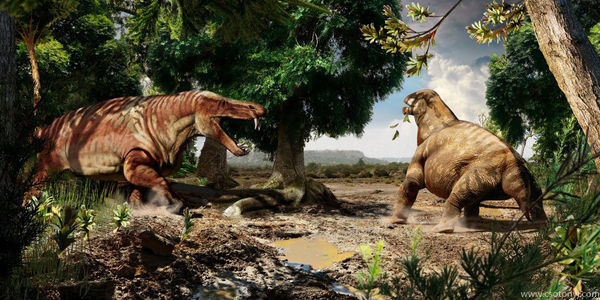
Слева – титанозух, справа – мосхопс. Это уже середина пермского периода, где-то 270 млн. лет назад, Южная Африка. Точнее, это сегодня их кости оказались в Южной Африке, а тогда они жили на одном материке с украшенным каренитом. Если пеликозавры прошли треть пути от амфибии до млекопитающего, то эти чудища – две трети. Оба они относятся к одному отряду тапиноцефалов. Очень массивные – впрочем, это характерно для всех четвероногих того времени, скелеты созданий размером с собаку или лошадь имеют пропорции, как у слона – толстенные кости с раздутыми мыщелками, сплошной, как у предков-стегоцефалов, череп с тремя глазницами… Не знаю, с чем это связано, вряд ли с какими-то внешними условиями (членистоногие-то того времени имеют примерно современные пропорции), скорее, с несовершенством костной ткани – меньшая прочность компенсировалась большей толщиной. Оба животных на картинке достигали двух метров длины и двигались как помесь носорога и комодского варана, в том числе хищный (или всеядный) титанозух. Долго пережевывать пищу они не могли – у них не было вторичного нёба, позволяющего одновременно есть и дышать. Не особо умели они и нагибаться, особенно мосхопс, да ему и незачем было – травы еще не было, он питался листьями и полусгнившими стволами, причем пасся, возможно, лёжа – долго враскорячку не простоишь – или в воде.

Замечательный эстемменозух обитал 267 миллионов лет назад в Западном Приуралье, представлявшем в то время узкую полоску суши между снежными трехтысячниками молодых Уральских гор и мелководным Пермским морем. Климат там тогда был примерно как сейчас в Сочи. Это терапсид, но непосредственное происхождение эстемменозухов установить не удается. Не нашли и останков близкородственных видов в отложениях других регионов – это такой чисто пермский в обоих смыслах зверь. И был он первым травоядным среди терапсид. Питался эстемменозух чем бог пошлет – водорослями, подгнившими стволами наземной каламитовой растительности, может быть, еще и падалью и разной малоподвижной водной сволочью. Этакая свинья. Был уже немножко теплокровным – по крайней мере, для бодания эти рожки на морде не годились, зато были покрыты сетью кровеносных сосудов, то есть служили как бы таким радиатором для головы, увеличивали площадь теплоотдачи, как уши у слона. Эстемменозух умел потеть – на черепах кое-где сохранились окаменевшие остатки шкуры – толстой, с большим количеством желез, и без всякой чешуи (на лапках – это складочки).
Климат в пермском периоде характеризовался, с одной стороны, все большей засушливостью, с другой – появлением и распространением растений, способных расти не только по колено в воде – голосеменных и настоящих папоротников. Вслед за растениями на сухое двинулись и животные, адаптируясь к по-настоящему сухопутному образу жизни.
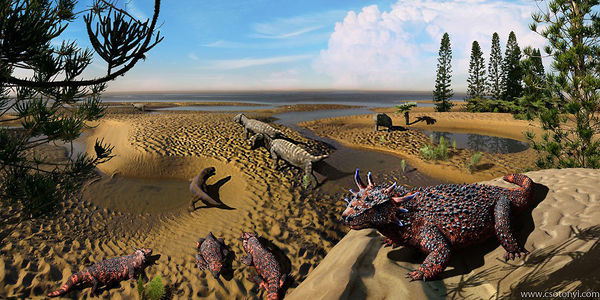
Это уже конец Пермского периода, 252 млн лет назад. Рогатые красно-синие твари на переднем плане – эльгинии чудесные, мелкие (до 1 м) парейазавры из Шотландии. Их окраской, возможно, художник намекает на то, что они могли быть ядовиты – известно, что кожа парейазавров содержала большое количество желез. Эта другая, независимая от синапсидов ветвь пути из амфибий в рептилии, судя по всему, так и оставшаяся полуводной и таковой же и вымершая. А вот толстенькие на заднем плане – гордония и две геикии – дицинодонты, вполне независимые от воды создания с сухой кожей, вторичным нёбом, позволявшим жевать пищу и двумя клыками для (наверное) копания. Вместо передних зубов у них был роговой клюв, как позже у цератопсид, и, возможно, их основная диета была такой же. Как и цератопсы в конце мезозоя, дицинодонтов в конце палеозоя было много, разных и повсюду,некоторые даже пережили пермь-триасовое вымирание. А вот кто к ним подкрадывается – точно непонятно, но, кажется, какой-то мелкий (или просто молодой) горгонопсид. Бывали и крупные:
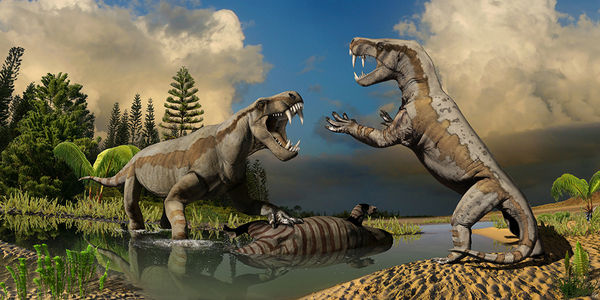
Это два диногоргона оспаривают тело какого-то немелкого дицинодонта. Сами диногоргоны трехметровые. Это одни из крупнейших представителей горгонопсов – уже почти зверей, менее прогрессивные, чем дицинодонты (например, вторичным нёбом и диафрагмой они так и не обзавелись, не успели), при этом стоявшие ближе них к предкам млекопитающих. Весьма по тем временам подвижные, сильные и тупые создания, верховные хищники большинства экосистем… но не повсюду.
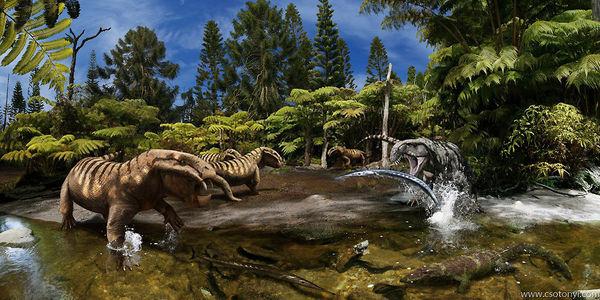
На переднем плане – снова дицинодонты, а подальше справа – архозавр, трехметровая крокодилоподобная тварь: еще не динозавр, но одна из боковых ветвей предков динозавров и крокодилов. К динозаврам и птицам он имеет примерно такое же отношение, как диногоргоны – к нам. Длинные рыбы - заурихтисы, дальние родственники осетровых, выполнявшие в этой экосистеме роль щук. Справа под водой - хрониозух, один из последних рептилиоморфов, с которых мы начали это рассказ. Их время вышло, да и для остальных изображенных на рисунке созданий мир скоро изменится...
Фауна триаса
Поначалу видим примерно такую же картину как и в перми:


В болоте сидит похожий на крокодила архозавроид, а вокруг него дицинодонты. Это, правда, другой архозавроид и другие дицинодонты – протерозух и знакомые вам листрозавры. Кстати, в триасе некоторые архозавроиды спохватились и, как и примитивнейшие из пермских синапсид, отрастили на спинах паруса для терморегуляции. Парусные крокодилы тоже быстро вымерли, но начало было положено – архозавры по примеру синапсид нащупывали пути к достижению теплокровности.
А слева на коряге сидит тринаксодон – один из наиболее изученных цинодонтов, и по нему видно, что эти-то зверушки времени в великое вымирание не теряли – черты млекопитающих у него выражены значительно сильнее, чем у позднепермских цинодонтов. Он был мохнат и умел копать норки – в бывших норках останки многих из тринаксодонов и находят. Вот другой хорошо изученный раннетриасоый цинодонт – циногнат:
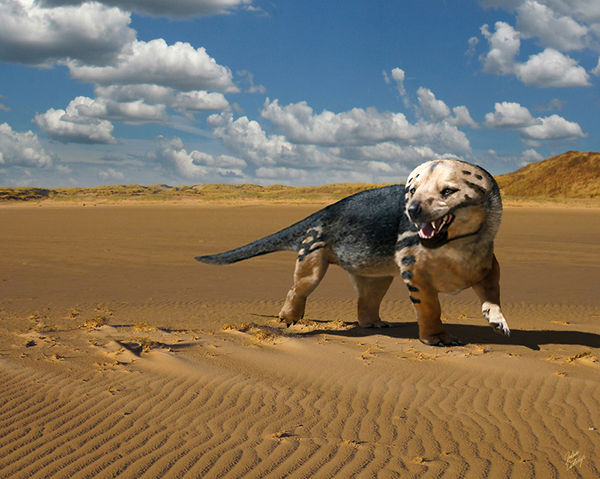
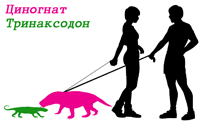
На рисунке он похож на собачку с носиком, с шерсткой, в динамике больше напоминал ящерицу – видели, как они ползают, изгибая тело, "выбрасывая" в стороны лапы? Физиологически же больше напоминал утконоса с его "частичной" теплокровностью и по современным меркам был неуклюж со своими толстыми пятипалыми конечностями, и туповат – мозгов у тогдашних зверей почти не было. Можно предположить, что еще и весьма свиреп: у примитивных млекопитающих хищников слабо выражена реакция торможения, за счет одной лишь ярости маленькая сумчатая куница может справиться с кошкой, а землеройка убивает превосходящую ее размерами, силой и зубастостью мышь. Можно предположить, что прообразы млечных желез по типу современных однопроходных у них уже были и помогли пережить трудные времена: взрослое сильное животное могло добывать пищу за своих детенышей (возможно, первоначальной функцией млечных желез было не столько выкармливание, сколько "выпаивание" детенышей – снабжение их необходимой влагой и солями – и возникнуть такая функция могла еще в засушливый пермский период).
А это уже конец триасового периода, 200 млн. лет назад:

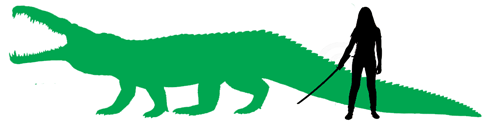
Здоровенный "крокодил" – на самом деле фитозавр смилозух. От него со смущенным видом убегает очередной дицинодонт плацериас – такие твари, в длину больше трех метров, дотянули до конца триасового периода. Плацериас чувствует себя одиноким – обычно они вели стадный образ жизни; об этом говорят не только "групповые захоронения" этого вида, но и заметные различия в уровне развития бивней у разных особей – то есть это, возможно, был избыточно развитый статусный атрибут, как рога у оленей.
Метровый "тритончик" на переднем плане – ванклавея: не земноводное, а еще один архозавроморф, бронированный собрат крокодилов и динозавров, но решивший жить, как саламандра и даже отрастивший для этого хвостовой плавник. Слева в тени таится целофизис – и это уже настоящий динозаврик, один из первых; могущий достигать трех метров в длину ловкий и опасный хищник.
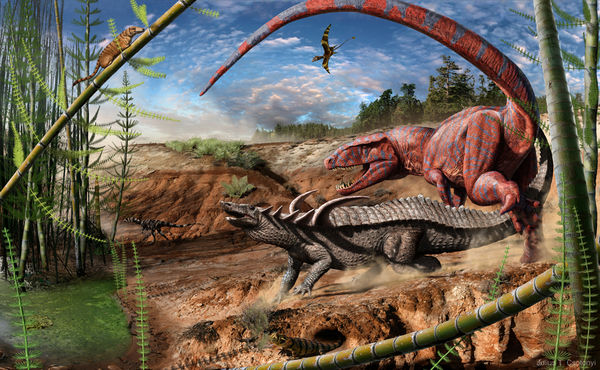

Красный, в таком ракурсе похожий на тираннозавра – на самом деле постозух, крокодиломорф из равизухий, независимо от динозавров попытавшийся встать на две ноги. Точнее, большую часть времени он ходил по-крокодильи на четвереньках с задранным вверх крестцом – его руки были длиннее и мощнее, чем у теропод, а ноги заметно короче (и с крокодильими ступнями, а не с птичьими лапами, как у теропод) – но когда нужна была быстрота, мигом становился двуногим: задние конечности могли выпрямляться. По тем временам для своих размеров он был очень быстр и вынослив, и поэтому красный, а не зеленый – ему не было нужды маскироваться.
Шипастый – десматозух, он был в крокодильем хит-параде.
На заднем плане чешет прочь герреразавр, в небе порхает эудиморфодон – первый известный птерозавр, интересная штука, о нем как-нибудь потом. Из норки выглядывает разбуженный гипсогнат – проколофон, дальний родственник парейазавров; в луже просматривается коскинодон – это вообще темноспондил, реликт перми и карбона – некоторые не вымерли еще, глядите-ка! На веточке слева чинно сидит дроматерий, и это уже вполне себе млекопитающее.
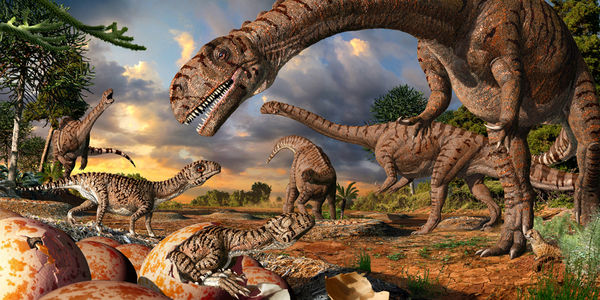
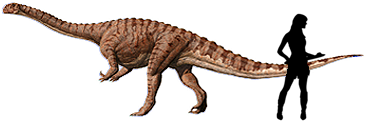
Это уже начало юры, 190 млн лет назад. Гнездовье массоспондилов. Они прозауроподы. Массоспондилы могли стоять и передвигаться на двух ногах и, не обладая мощью своих кузенов-зауропод, для защиты имели по большому когтю на передних лапках. Возможно, эти когти служили и для пригибания ветвей – зубы этих динозавров, напоминающие редкую гребенку, годились для соскребания листвы или хвои с веток. Хотя птенцы их при вылуплении из яиц вообще зубов не имели, а передвигаться могли, имея сильно отличающиеся от взрослых пропорции тела, только на четвереньках, и весьма неуклюже. Похоже, при рождении они были беспомощными и неспособными самостоятельно кормиться, а значит, заботу о них брали на себя родители. Каким образмо? Отрыгивали им пищу, перетертую гастролитами в желудке? А черт их знает, слишком мало известно о зауроподоморфах.

Котельничская фауна пермского периода
В качестве небольшого дополнения представлю вам Котельничскую фауна пермского периода, животных обитавших по берегам Приуральского (Пермского) моря.
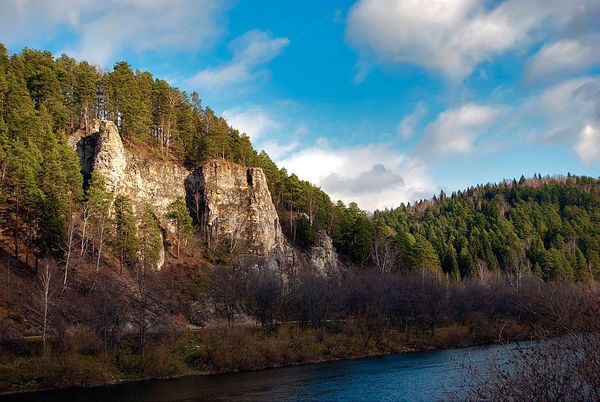
В старые времена, когда Горнозаводскую железную дорогу еще не построили, самым экономичным способом транспортировки продукции уральских металлургических заводов был сплав по рекам на небольших грузовых барках. "Лоцманы" этих барок моря в глаза не видывали, однако во время сплава по речке имели вполне реальные шансы разбить свои суда о самые настоящие рифы. Вот, например, скала Ермак на Сылве (вверху) – риф древнего пермского моря, правда, не коралловый, а мшанковый. Представляет собой практический полный стратиграфический разрез пермского периода – то есть весь этот период, четыре с половиной десятка миллионов лет, эта колония микроскопических созданий, одна из многих, слой за слоем росла под водами Пермского моря. По берегам этого моря жили разные интересные зверюги.
Широты даются с точностью 5-10 градусов, долготы взяты произвольно; значимы лишь разности долгот.
МН - Монголия;
РР - Русская Равнина;
ПУМ – ПриУральское (Пермское) Море;
Кзс - Казахстан;
СК - Северо-Китайский микроконтинент, имевший соприкосновение с Ангаридой;
ЮК - Южно-Китайский микроконтинент.
Север и восток Ангариды были заселены холодолюбивой фауной и временами покрываемы льдом, на южном полюсе также наличествовало оледенение массивнее нынешнего антарктического.

Нагревающийся на солнышке украшенный каренит (Karenites ornamentatus) – насекомоядная тварь, застрявшая по своему строению где-то между хорьком и саламандрой. Длиной сантиметров сорок, точнее сказать трудно – его жопку и хвостик так и не нашли. Относится к тероцефалам – группе зверообразных, родственной предкам млекопитающих. Ямки на его черепе говорят о наличии усов, а те, возможно, о том, что он охотился в воде, как и строение его слуховой системы – ему было проще слышать под водой или улавливать вибрации почвы, положив нижнюю челюсть на землю, чем воспринимать звуковые волны в воздухе. Возможно, впридачу к вибриссам он был покрыт короткой шерсткой – скорее всего, первоначально ролью шерсти было предохранение кожи синапсид от быстрого высыхания, а уж потом, по мере возникновения теплокровности, она взяла на себя функции сохранения тепла.
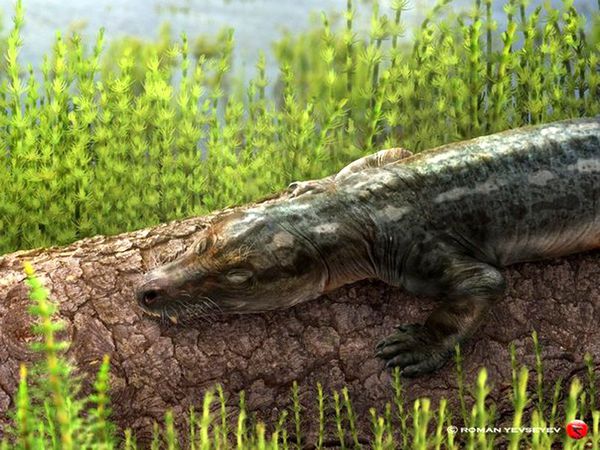
По хребту у каренита шел недопанцирь из ряда окостеневших щитков под кожей, а по краям кисти – рудименты дополнительных пальчиков, доставшиеся ему от наших с ним общих предков, не сразу определившихся с количеством пальцев. При этом каренит обладал довольно хорошо развитым головным мозгом, что выгодно отличает его от многих других пермских созданий, например таких, как его друг перплексизавр (Perplexisaurus foveatus):

Он тоже был тероцефал, раза в полтора меньше каренита. А пробурнетия была раза в полтора больше:
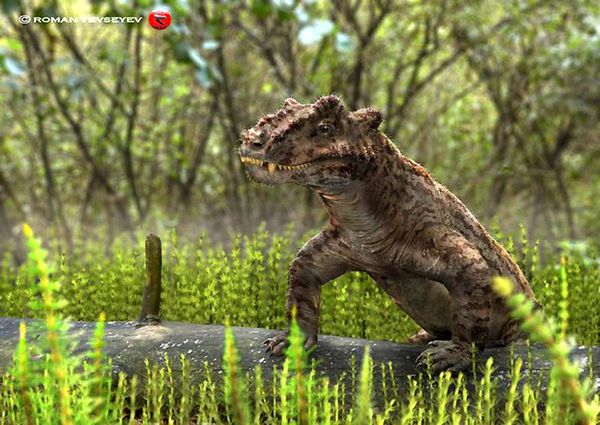
Про пробурнетию (Proburnetia viatkensis) вообще мало чего известно, от нее одна головка осталась, со странными выростами, напоминающими таковые у эстемменозуха. А вот то, что выглядит как заросли ивняка на заднем плане, на самом деле заросли пурсонгии, растения из класса гинкговых – в перми их было не менее десятка родов, из которых до наших дней дожил лишь один вид – собственно гинкго, причем благодаря участию человека – японцы берегли реликтовое древо и высаживали его подле храмов. А в пермском периоде по ветвям гинкговых частенько лазали суминии (Suminia getmanovi).

Это небольшое – длиной около полуметра – изящное животное с хорошо развитыми пальцами на лапах (один был противопоставлен) и длинным гибким хвостом напоминало помесь обезьяны и ящерицы с торчащими лошадиными зубами. Состоит в одном отряде с уже упоминавшимися дицинодонтами. Один раз удалось найти целую плиту окаменевшего песчаника, на которой находилось около двадцати скелетов суминий. Может, они так и жили, группой, а может быть, тела были снесены потоком из разных мест, скажем, во время наводнения. Суминии умели жевать – их челюсти двигались в нескольких плоскостях, а износ зубов говорит о том, что их пищей была грубая растительность, содержащая минеральные кристаллики, например, хвощи. Суминии могли забраться на деревья не только в поисках пищи, но и для защиты от крупных наземных хищников. Хотя не всегда успевали – об этом свидетельствуют разломанные кости суминий, встречающиеся в окаменевшем помете хищных тероцефалов, таких, как вяткозух (Viatkosuchus sumini):
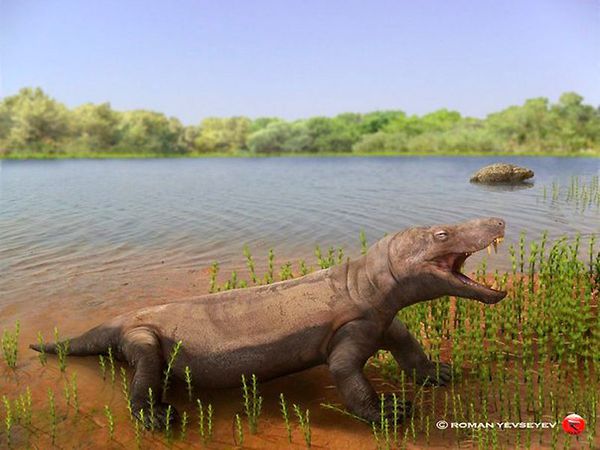
Конечности его были коротки и, как и у других зверообразных того времени, торчали в стороны, то есть ходоком на длинные дистанции он был неважным, но вот на рывке мог быть, подобно современным варанам, весьма стремителен. Это позволяло ему кушать всех вышеперечисленных животных, и не только их: найден скелет вяткозуха с окаменелым непереваренным содержимым кишечника, в котором обнаружились кости черепа эмеролетера (Emeroleter levis):
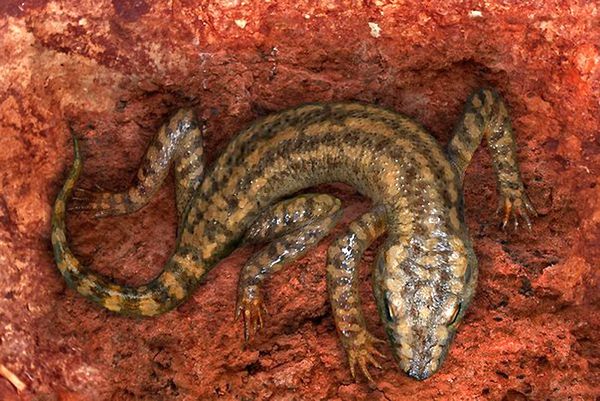
Предыдущие звери, хоть и были похожи на ящериц, относились в синапсидам, к которым относятся и наши предки-цинодонты, а вот эмеролетер, хоть и еще больше похож на ящерицу, относится к анапсидам и родственен скорее черепахам. Мозги у него были слабоваты, зато зачем-то был третий глаз и совершенное ухо, позволявшее ему слушать согласное жужжанье насекомых, коих он, вероятно, и пожирал. Обитал он вблизи водоемов, в которых паслись и куда более внушительные анапсиды:

Парейазавры (Deltavjatia vjatkensis вверху, Proelginia permiana внизу)– тяжеловесные медлительные парарептилии размерами от поросенка до гиппопотама – вероятно, напоминали гиппопотамов и по образу жизни. Скорее всего, они питались мягкой водной растительностью и паслись в водоемах, однако по мере истощения или пересыхания "пастбищ" могли преодолевать значительные расстояния по суше в поисках новых. Челюстные зубы служили им для срезания и обкусывания сочных растений, но не для жевания: эту роль выполняли расположенные на нёбе мелкие зубы, выполнявшие роль терки.

Тратить много времени на жевание парейазавры позволить себе не могли – полной перегородки между носовой и ротовой полостями у них не было, поэтому одновременно жевать и глотать они не могли – сорвал, растер по "терке" и проглотил. Возможно, несколько помогало ситуации кожное дыхание, как у жабы. По мнению некоторых исследователей у них, как и у современных земноводных, имелся горловой мешок, посредством которого происходило проталкивание воздуха в легкие. Хорошее развитие голосовых пазух в черепе парейазавров свидетельствует о том, что ящеры могли общаться между собой посредством мощных горловых звуков, например, в брачный период. Под мягкой железистой кожей у них залегали остеодермы – какая-никакая защита от клыков саблезубых горгонопсов, таких, как вяткогоргон (Viatkogorgon ivachnenkoi):
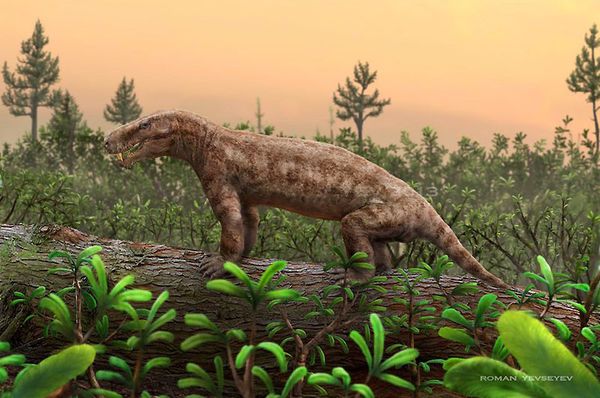
Сам вяткогоргон был невелик – с дворнягу, однако и котельничские парейазавры-дельтавятии были размером не с бегемота, а с некрупного борова. А для пробивания их толстой шкуры вяткогоргону и были нужны клыки:

Самой развитой частью его мозга был мозжечок – это обеспечивало хорошую координацию движений. Задние конечности точно могли принимать выпрямленное положение, а недавние исслндования скелета показали возможность передвижения и с выпрямлением передних ног – вероятно, вяткогоргон и его собраться горгонопсы были наиболее стремительными хищниками своего времени. Если парейазавра завалить не удавалось, вяткогоргон мог поймать и суминию или какого-нибудь австралобарбара (Australobarbarus kotelnitshi):

Австралобарбар был примитивным дицинодонтом. Большинство его сородичей обитало тогда южнее, в той части Пангеи, что потом стала Африкой, а это вот предпочел Приуралье. Как и другие дицинодонты, он обладал одновременно клыками и клювом, а также лапами, неплохо приспособленными для рытья.

Иллюстрации фауны пермского периода и триаса - от замечательных художников Романа Евсеева, Влада Константинова и Джулиуса Чотоньи. На заставке - эстемменозух и иностранцевия.


Сиби́рские тра́ппы — одна из самых крупных трапповых провинций мира, расположена на Восточно-Сибирской платформе. Сибирские траппы изливались на границе палеозоя и мезозоя, а именно пермского и триасовых периодов. Одновременно с ними произошло крупнейшее (пермо-триасовое) вымирание видов в истории Земли. Они развиты на площади около 4 млн км2, объем извергнутых расплавов составил порядка 2 млн км3 эффузивных и интрузивных пород.
ОтветитьТраппы развиты во всей Восточно-Сибирской платформе, в Хатангском прогибе, в Минусинской котловине, зона магматизма простирается и на шельфе Евразии, на дне Карского моря. В районе их развития расположены реки Нижняя Тунгуска, Подкаменная Тунгуска, Тюнг и др. Сибирские траппы слагают плато Путорана.
Траппы выходят на поверхность в основном на Среднесибирском плоскогорье, но общая площадь вулканогенно-осадочной толщи больше как минимум в 3 раза - значительные площади погребены под более поздними осадками Западной Сибири, много периферических очагов на шельфе Карского и Баренцева моря, Кузбасса и, по некоторым данным, в Казахстане. Таким образом, суммарная площадь Сибирской трапповой формации оценивается в 1,5 миллиона квадратных километров.
Вулканогенная толща состоит из 2 частей: нижней туфогенной, и верхней лавовой.
Туфы залегают с размывом на пермских отложениях, разрез начинается с переслаивания туфов и осадков, выше по разрезу доля осадочных пород резко сокращается. Средняя мощность толщи составляет 1000-1200 м.
Лавовая толща сложена многочисленными покровами толеитовых базальтов, мощностью от 1-2 до десятков м, протяженностью сотни км. Максимальная суммарная мощность лавовой толщи наблюдается на плато Путорана - 2-3 км. Широко распространены субвулканические интрузии, особенно по периферии траппового ареала.
Излияния шли в обстановке растяжения, носили трещинный характер, но трещинным извержениям предшествовал этап эксплозивно-взрывной деятельности.
Самые массовые излияния шли в узком интервале: 249-251 млн лет. за которые было извергнуто больше миллиона кубических километров базальтов. Несмотря на значительные объемы изверженного материала, значительного проседания земной коры не произошло.
Среди вулканических пород абсолютно доминируют толеитовые базальты, но на ранних стадиях формировались покровы и силлы щелочных и щелочно-ультраосновных пород (Маймече-Котуйская щелочная провинция).
Также формирование Сибирских траппов сопровождалось образованием трубок взрыва по восточному краю трапповой провинции, в самом сердце Сибирской платформы, в Тунгусско-Вилюйской синеклизе и на западном склоне Анабарского щита. На настоящий момент известно около 200 кимберлитовых трубок.